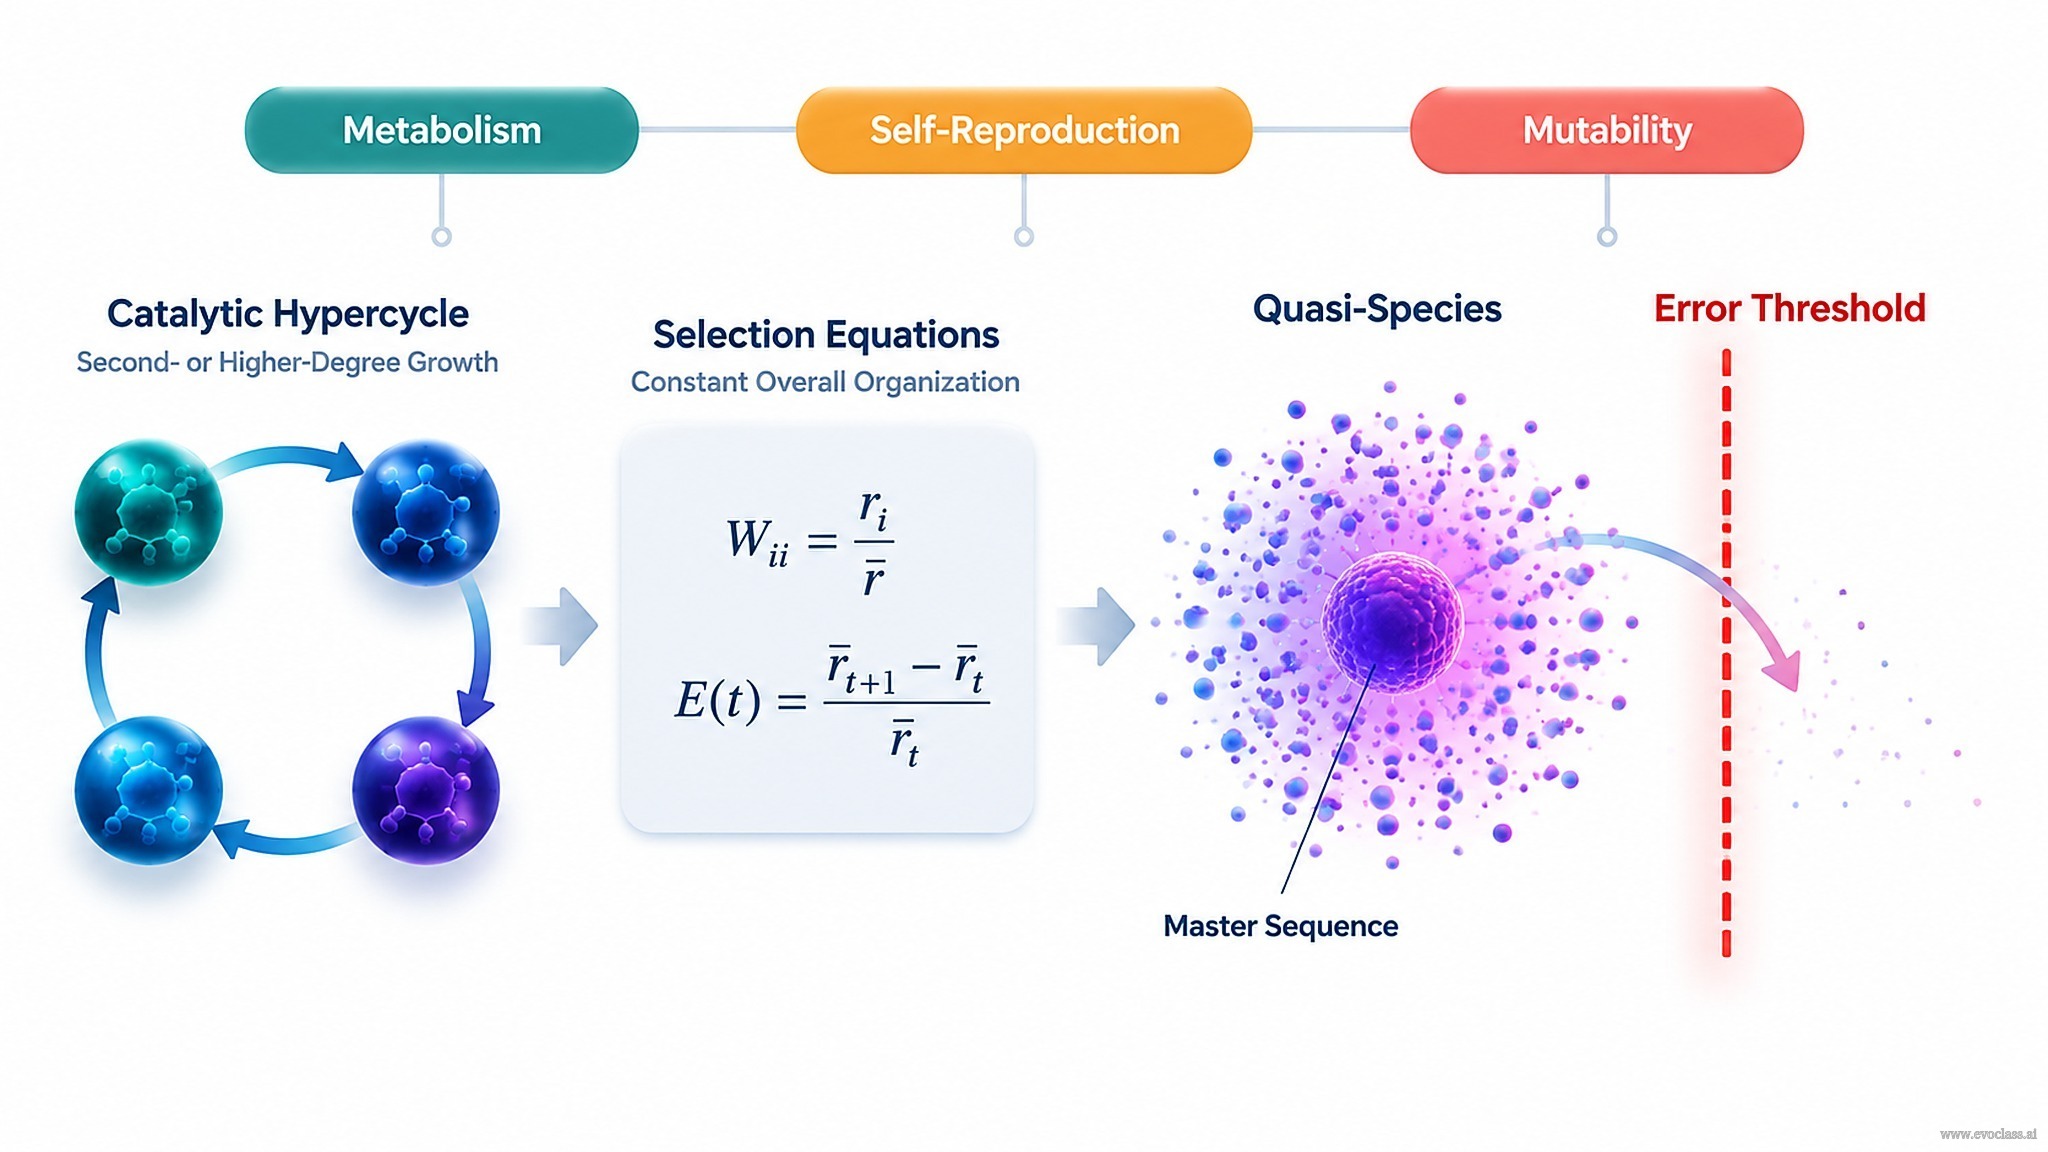
Questa lezione si apre con una domanda centrale per la teoria dell'origine della vita: come può un insieme di molecole autoreplicanti generare selezione molecolare senza un macchinario cellulare preesistente? La risposta sviluppata qui è l' iperciclo catalitico: un legame ciclico di unità autoreplicanti in cui la replicazione di ciascuna unità è cataliticamente sostenuta da un altro membro del ciclo. Il risultato è un'auto-organizzazione collettiva, non una collezione di replicatori indipendenti.
Tre organizzazioni di crescita
- Crescita catalitica semplice: un catalizzatore esterno promuove la replicazione di uno stampo, ma il catalizzatore stesso non è prodotto dallo stesso ciclo. La legge di crescita non è auto-amplificante.
- Crescita autocatalitica: una molecola catalizza la propria replicazione o quella delle molecole dello stesso tipo. Il tasso di crescita contiene un termine proporzionale alla prima potenza della concentrazione del replicatore—auto-amplificazione di primo grado.
- Crescita iperciclica: la replicazione è organizzata come un ciclo chiuso A → B → C → ... → A. Poiché ogni membro è prodotto sotto la catalisi di un altro membro, la crescita complessiva dipende da prodotti di almeno due concentrazioni. Ecco perché gli ipercicli catalitici sono sistemi di secondo grado o superiore.
La distinzione è importante perché solo l'organizzazione iperciclica accoppia l'autoreplicazione a una dinamica collettiva e non lineare in grado di sostenere la selezione a livello molecolare.
Prerequisiti darwiniani
Affinché avvenga la selezione molecolare, devono essere soddisfatte tre condizioni:
- Metabolismo: una fonte di energia libera e di materiale per mantenere lo stato organizzato lontano dall'equilibrio.
- Autoriproduzione: la capacità delle unità di moltiplicarsi, affinché le varianti vantaggiose possano aumentare di numero.
- Mutabilità: variazione ereditabile, senza la quale non esiste substrato per la selezione.
Questi tre prerequisiti sono condizioni al contorno: di per sé non specificano la dinamica quantitativa, ma definiscono il dominio in cui una descrizione darwiniana è significativa.
Equazioni di selezione in organizzazione complessiva costante
Quando la concentrazione totale dei replicatori è mantenuta costante, le frequenze
Qui Wii è il valore selettivo del tipo di replicatore i, che incorpora i suoi tassi di replicazione e degradazione. E(t) è il produttività in eccesso media, la media ponderata sulla popolazione dei valori selettivi. Un tipo aumenta in frequenza quando il suo W_ii supera E(t) e diminuisce quando scende al di sotto di E(t). La condizione di organizzazione costante rende la selezione un confronto relativo anziché una corsa alla crescita assoluta.
Equilibrio mutazione-selezione e la quasi-specie
La replicazione reale è soggetta a errori. L'equilibrio mutazione-selezione non produce un'unica sequenza di tipo selvatico dominante; genera invece una quasi-specie, una distribuzione organizzata di sequenze mutanti centrata su una sequenza master. Il tipo selvatico è quindi il membro più probabile di una nube di sequenze correlate, non l'unico bersaglio della selezione. La distribuzione è stabile quando il vantaggio selettivo della sequenza master bilancia il flusso mutazionale che se ne allontana.
La soglia d'errore
La quasi-specie può persistere solo se il tasso di mutazione per replicazione è sufficientemente basso. Oltre la soglia d'errore, la sequenza master non può trasmettere affidabilmente la propria informazione, la nube mutante si delocalizza e la distribuzione organizzata collassa in uno stato mutazionalmente randomizzato. Ciò limita quanta informazione un iperciclo o una quasi-specie possono mantenere in modo riproducibile. Il percorso iniziale—ciclo catalitico → equazioni di selezione → quasi-specie → soglia d'errore—collega così l'auto-organizzazione molecolare al tetto informativo fondamentale dell'evoluzione darwiniana a livello molecolare.
Percorso dell'iperciclo cataliticoUn iperciclo catalitico chiuso conduce alle equazioni di selezione con valore selettivo Wᵢᵢ e produttività in eccesso media E(t), poi alla nube di quasi-specie e alla barriera della soglia d'errore. I tre prerequisiti darwiniani—metabolismo, autoriproduzione e mutabilità—inquadrano la transizione dall'auto-organizzazione molecolare alla selezione molecolare.